چکیده
عدم دسترسی مستقیم به بافت مغز انسان، مطالعات پیرامون تکوین و کارکرد مغز را با چالش مواجه کرده است؛ مشکلی که مدلهای عصبی مشتق از سلولهای بنیادی در حال گرهگشایی از آن هستند. پیوند ارگانوئیدهای عصبی به جوندگان امکان بررسی درونتنی تکوین عصبی، عملکرد مدارهای مغزی و فنوتیپهای رفتاری میزبان را میسر میسازد. با این حال، محدودیتهای فضایی و رقابت با مدارهای عصبی میزبان، مانع از ادغام کامل ارگانوئیدها میشود که این مسئله برای مطالعه بیماریها نقشی کلیدی دارد. در این پژوهش، بستری برای پیوند ارائه شده است که با استفاده از راهبردی ژنتیکی، نورونهای گلوتاماترژیک نئوکورتکس و هیپوکامپ موش را حذف کرده (موشهای آپالیال) و با پیوند ارگانوئیدهای قشر مغز انسان (hCO) در دوران نوزادی به فضای خالی قشر مغز، موشهای زنومغزی تولید میکند. این فرایند موجب رشد چشمگیر بافت پیوندی، اشغال بخش عمده حجم قشر مغز و شکلگیری انواع گوناگون سلولهای قشری انسان از جمله نورونهای فرافکن خارجتلانسفال لایه ۵ میشود. این نورونها با دستگاه عصبی موش یکپارچه شدند و تصویربرداری کلسیمی و بررسیهای الکتروفیزیولوژیک از سراسر بافت پیوندی، الگوهایی از فعالیت سازمانیافته مشابه مدارهای در حال تکوین را نشان داد. ارزیابیهای رفتاری نشان داد که تحرک عمومی حیوان حفظ شده و تنها تفاوتهای ظریفی در هماهنگی اندامها و رفتارهای خودبهخودی دیده میشود. در نهایت، این بستر امکان سنجش شاخصهای رفتاری را در مدلی از آسیب بافتی به سلولهای در حال تکوین قشر مغز فراهم کرد. انتظار میرود این روش افقهای تازهای برای مطالعه مداری، مدلسازی بیماریها و توسعه داروها بگشاید.
مقدمه و یافتههای اصلی
مدلهای عصبی مشتق از سلولهای بنیادی انسان، ظرفیت بالایی برای مطالعه جنبههای ناشناخته تکوین مغز انسان، کشف سازوکارهای بیماریها و شناسایی تفاوتهای تکاملی میانگونهای ارائه میدهند. به عنوان مثال، هدایت سلولهای بنیادی پرتوان القایی انسانی (hiPS) برای تشکیل ارگانوئیدهای سهبعدی قشر مغز (hCOs)، بخشهایی از فرایند نورونزایی و گلیوزایی قشر مخ را در محیط آزمایشگاهی شبیهسازی میکند. پیوند این ارگانوئیدها به قشر مغز نوزاد موش صحرایی، بلوغ و یکپارچگی این نورونها را ارتقا میدهد؛ اما محدودیت فضای درون جمجمه و رقابت با قشر مغز میزبان بر سر برقراری اتصالات، پتانسیل آنها را محدود میسازد. اگرچه ارگانوئیدهای پیوندی میتوانند تا یکسوم نیمکره قشر مغز موش صحرایی را پر کنند، این نورونها در بستری از اتصالات از پیش موجود جونده رشد میکنند. از آنجا که سرعت تکوین نورونهای جوندگان از انسان بیشتر است، محیط میزبان ممکن است تکثیر و امتداد آکسونی پیوند را محدود کند. این مسئله به ویژه هنگام مدلسازی اختلالات تکوینی عصبی همراه با اختلالات گسترده مداری و ارزیابی درمانها درون بدن حیوان بسیار برجسته است.
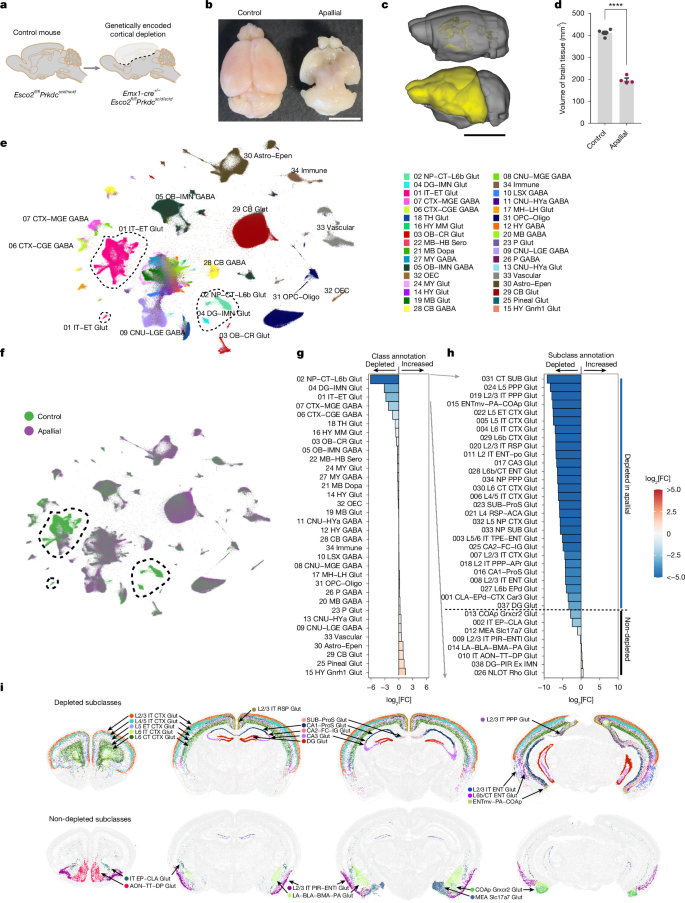
برای غلبه بر این چالشها، موشهای آپالیال دچار نقص ایمنی تولید شدند که در آنها پالئوم پشتی و میانی در مراحل اولیه تکوین به شیوه ژنتیکی حذف شده است. بررسیهای تشریحی، تصویربرداری تشدید مغناطیسی (MRI) و توالییابی آرانای تکهسته از کل مغز (snRNA-seq) تأیید کرد که این موشها فاقد مشتقات پالئوم پشتی و میانی نظیر نئوکورتکس و هیپوکامپ هستند. پیوند ارگانوئیدها به این موشها، موسوم به زنومغزی (xenocortication)، به رشد حجم قابلتوجهی از بافت عصبی انسانی منجر شد که تنوع سلولی قشر در حال تکوین مغز انسان را بازآفرینی میکند. در این موشهای زنومغزی (XCX)، ارگانوئیدها درون دستگاه عصبی مرکزی میزبان یکپارچه شده و فعالیت الکتریکی خودبهخودی نشان دادند. یادگیری ماشین بر روی توالییابی حرکتی (MoSeq) برای رفتارهای خودبهخودی موش، الگوهای متمایزی را در گروههای کنترل و آپالیال نشان داد و گروه XCX در موقعیتی بینابینی نسبت به این دو گروه قرار گرفت. آزمونهای رفتاری اختصاصی نیز نشان دادند موشهای آپالیال در مهارتهای وابسته به نئوکورتکس و هیپوکامپ (مانند هماهنگی حرکتی ظریف در دستگاه CatWalk و حافظه کاری در ماز Y) دچار اختلال بودند؛ نقصی که در موشهای XCX تنها بهصورت جزئی دیده شد. همچنین قرارگیری در معرض هیپوکسی به بروز پاسخ سلولی و افت عملکرد حرکتی در موشهای XCX انجامید که مؤید قابلیتهای این پلتفرم در مدلسازی بیماریهاست.
در این پژوهش، از راهبرد حذف مشروط ژنی برای از بین بردن بخش عمده قشر مغز موش از طریق مرگ برنامهریزیشده سلولی بهره گرفته شد. ژن Esco2 منحصراً در سلولهای بیانکننده نشانگر پالئوم پشتی و میانی (Emx1) در زمینه ژنتیکی موشهای دارای نقص ایمنی SCID حذف شد (موشهای آپالیال: Emx1-cre+/-Esco2fl/flPrkdcscid/scid). مطالعات پیشین نشان داده بود که موشهای آپالیال تازه متولدشده صداهای اولتراسونیک تولید میکنند، اما بقا و تغییرات رفتاری آنها در سنین بالاتر بررسی نشده بود. برای امکانپذیر ساختن مطالعات عملکردی و رفتاری در سن بلوغ، تدابیر متعددی از جمله بهینهسازی تغذیه و بهرهگیری از مادران رضاعی فعال نژاد سوئیس وبستر اتخاذ شد که به نرخ بقای مناسب و تفکیک مندلی ۲۳.۴ درصدی انجامید. تصویربرداری MRI و رنگآمیزیهای بافتی نشان داد ساختارهای زیرقشری، سطح پشتی مغز را تشکیل داده و ساختارهای قشری تا حد زیادی حذف شدهاند؛ بهطوریکه کاهش ۵۰ درصدی حجم بافت مغز نسبت به گروه کنترل ثبت شد. توالییابی تکهسته کل مغز (snRNA-seq) در سن ۵ ماهگی، کاهش هفت برابری تمامی ردههای نورونی گلوتاماترژیک مشتق از پالئوم پشتی را در کنار حفظ نورونهای پیاز بویایی و سایر ردههای غیرپالئومی نشان داد. همچنین نورونهای گابائرژیک قشری نیز کاهش یافتند، اما سلولهای باقیمانده تغییر سرنوشت سلولی قابلتوجهی نشان ندادند.
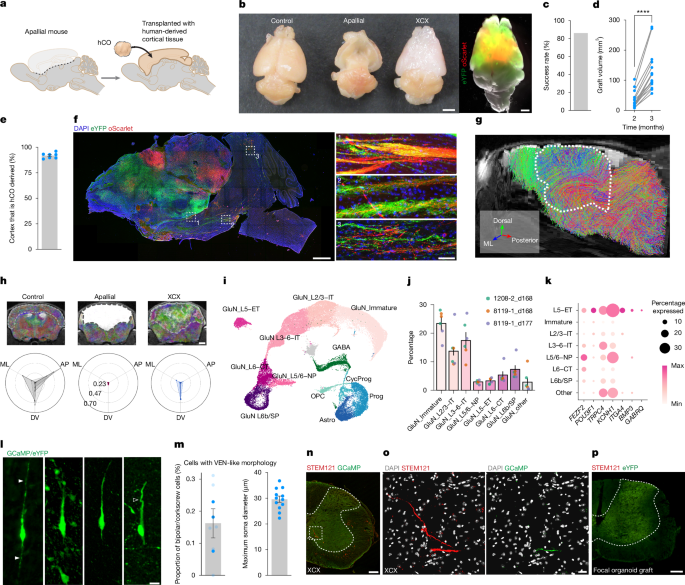
پس از تأیید حذف مؤثر قشر مغز در مدل موش آپالیال، ظرفیت ارگانوئیدهای انسانی برای رشد و یکپارچگی در این حفره مورد آزمایش قرار گرفت. با بهینهسازی روش پیوند چهار ارگانوئید به موشهای نوزاد، نرخ موفقیت پیوند به ۸۶.۲ درصد در ۲۹ موش رسید. ارزیابی با MRI نشان داد که حجم پیوند بین ماههای دوم و سوم پس از جراحی حدود ۴.۷ برابر افزایش یافت. در ماه سوم، بافت پیوندی زنومغزی ۹۱.۹ درصد از حجم کل بافت قشر مغز را با تراکم میانگین حدود ۳۲,۰۰۰ نورون در هر میلیمتر مکعب تشکیل داد.
یکپارچگی ارگانوئیدها در دستگاه عصبی میزبان با روشهای ردیابی پیشرو (anterograde)، ردیابی پسرو (retrograde) مبتنی بر ویروس هاری و تصویربرداری تانسور پخش (DWI) بررسی شد. ردیابی پیشرو نشان داد که دستههای آکسونی منظمی از ساختارهای زیرقشری عبور کرده و به سمت برجستگی فوقانی مغز میانی (superior colliculus) امتداد مییابند. ردیابی پسرو نیز نشاندهنده برقراری ارتباطات ورودی از پالئوکورتکس، تالاموس و پالیدوم موش میزبان به بافت پیوندی بود. همچنین حضور پایانههای حاوی نتیرین-G1 (netrin-G1+) شاهدی بر وجود ورودیهای تالاموکورتیکال میزبان درون بافت پیوندی است.
برای ارزیابی اتصالات ساختاری در موشهای XCX، از روش تراکتوگرافی مبتنی بر DWI به منظور توصیف جهتگیری پخش آب و ریزساختار بافت استفاده شد. بردار اصلی پخش آب بیشتر در جهت پشتی-شکمی (DV) و سپس جانبی-میانی (ML) و قدامی-خلفی (AP) بود. محاسبه جذر میانگین مربعات انحراف (r.m.s.d.) نرمالشده برای گروههای کنترل (۰.۲۸) و XCX (۰.۲۶) نشان داد که الگوهای ریزساختاری و ورودیهای عصبی میزبان در موشهای پیوندی از نظم و ثبات قابل قبولی برخوردارند.
توالییابی تکهستهای در ماه پنجم پس از تمایز، حضور انواع ردههای اصلی قشر مغز شامل نورونهای گلوتاماترژیک لایههای عمقی و سطحی، سلولهای پیشساز، پیشسازهای اولیگودندروسیت و آستروسیتها را تأیید کرد. همچنین جمعیتهای پیشساز ویژه انسان مانند گلیاهای شعاعی خارجی (oRG) و سلولهای پیشساز میانی سهتوانه شناسایی شدند. مقایسه رونوشتها با دادههای جنینی انسان نشان داد که وضعیت بلوغ نورونهای گلوتاماترژیک در هفته بیستوچهارم، معادل اواخر سهماهه دوم بارداری انسان است. رنگآمیزیهای ایمونوهیستوشیمیایی نیز حضور آستروگلیای انسانی، میکروگلیاهای میزبان و عدم وجود واکنشهای التهابی شدید را به اثبات رساند.
رونوشتبرداری فضایی با روش MERFISH همبستگی بالایی را با نتایج snRNA-seq نشان داد (r۲ = ۰.۶۶). اگرچه به دلیل ساختار چندکانونی ارگانوئیدها لایهبندی کلاسیک سراسری دیده نشد، اما زیرردههای نورونی لایههای سطحی و عمقی بهصورت موضعی در مجاورت یکدیگر سازماندهی شدند که بازتابی از خودساماندهی سلولی است. با این حال، شیبهای بیان ژنی مشخصی برای ناحیهبندی قدامی-خلفی قشر مغز در این مقطع زمانی به دست نیامد که میتواند ناشی از عدم تطابق سنی میان بافت انسان و میزبان جونده باشد.
یافته قابل توجه دیگر، شناسایی دستهای از نورونهای فرافکن خارجتلانسفال لایه ۵ (L5-ET) درون پیوند بود که نشانگرهای ژنی اختصاصی ناحیه اینسولای قدامی (مانند GABRQ و BMP3) را بیان میکردند؛ نشانگرهایی که با نورونهای فون اکونومو (VENs) در ارتباط هستند. تحلیل مقایسهای نشان داد این رده سلولی در ارگانوئیدهای کشت دادهشده در محیط آزمایشگاهی تقریباً وجود ندارد، اما در مدل زنومغزی بیش از ۳ برابر بیشتر از روشهای پیشین پیوند تولید شده است.
نورونهای فون اکونومو (VENs) سلولهایی با جسم سلولی بزرگ و ریختشناسی دوکمانند یا پیچخورده هستند که تنها در پستانداران با مغز بزرگ تکامل یافتهاند و در جوندگان دیده نمیشوند. بررسیهای ساختاری در تمام موشهای XCX مورد آزمایش، سلولهایی با این ریختشناسی ویژه و میانگین قطر جسم سلولی ۲۹.۸ میکرومتر را شناسایی کرد که ۰.۱۶ درصد از سلولهای نشاندارشده را شامل میشدند.
با توجه به اینکه نورونهای کورتیکواسپاینال (قشری-نخاعی) جزو رده سلولی L5-ET هستند، برقراری ارتباط بافت پیوندی با نخاع میزبان مورد بررسی قرار گرفت. ردیابی پیشرو و رنگآمیزی همزمان برای آنتیژن اختصاصی انسان (STEM121) و GCaMP8s، حضور پایانههای آکسونی نورونهای انسانی را در نخاع گردنی موشهای پیوندی اثبات کرد، در حالی که چنین سیگنالی در موشهای کنترل کانونی یا سالم مشاهده نشد.
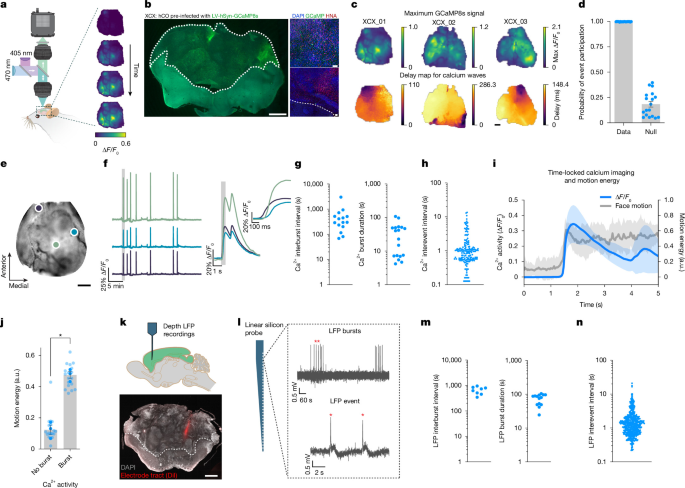
برای بررسی فعالیت عملکردی پیوند، ثبت کلسیمی در سطح کل بافت با اپتومغزنگاری (OEG) انجام شد. این پایشها امواج بزرگ و همگام کلسیمی را نشان دادند که در فواصل چند دقیقهای رخ داده و ظرف حدود ۱۰۰ میلیثانیه در سرتاسر سطح بافت پیوندی منتشر میشدند. این امواج کلسیمی همبستگی نزدیکی با حرکات دهانی-صورتی موش داشتند. ثبت الکتروفیزیولوژیک پتانسیل میدانی موضعی (LFP) با پروبهای سیلیکونی ۳۲ کاناله نیز فعالیتهای همگام و شبکهای گستردهای را ثبت کرد که مؤید شکلگیری یک شبکه عصبی فعال و یکپارچه در مغز میزبان است.
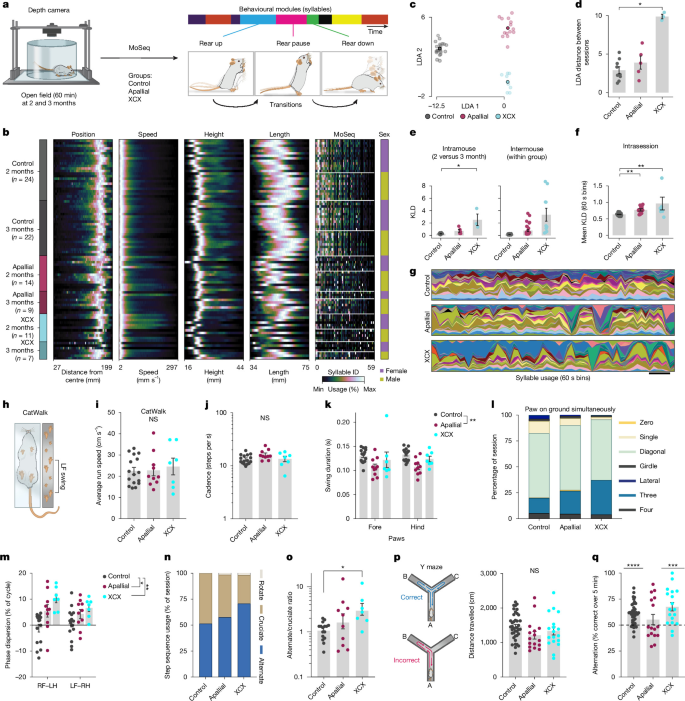
ارزیابی پیامدهای رفتاری حذف قشر مغز و پیوند بافت انسانی با استفاده از سامانه توالییابی حرکتی سهبعدی (MoSeq) انجام گرفت. وزن موشهای XCX در حد فاصل میان موشهای آپالیال و کنترل قرار داشت. تحلیل دادههای حرکتی نشان داد رفتارهای پیچیده موش به ۶۰ هجای رفتاری کلیشهای قابل تجزیه است که پروفایل رفتاری منحصربهفردی را برای هر گروه تعریف میکند.
طبقهبندیکنندههای خطی آموزشدیده بر پایه هجاهای حرکتی MoSeq توانستند جلسات موشهای کنترل را با دقت بالا تفکیک کنند، اما موشهای آپالیال و XCX همپوشانیهای زیادی نشان دادند. تحلیل تفکیک خطی (LDA) نشان داد که گروه زنومغزی در جایگاهی بینابینی قرار میگیرد؛ به این معنا که پیوند سلولهای انسانی بخشی از نقایص حرکتی و رفتاری ناشی از حذف قشر مغز را تعدیل کرده ولی ساختار رفتاری را بهطور کامل به سطح موشهای کنترل بازنگردانده است.
سنجش واگرایی کولبک-لایبلر (KLD) نشان داد که تکرارپذیری رفتاری در موشهای کنترل در بالاترین سطح بوده و در موشهای آپالیال و زنومغزی کاهش مییابد. رفتارهای خودبهخودی در موشهای XCX با تغییر وزندهی به چندین هجای رفتاری و ناپایداری در کاربرد هجاها در طول زمان همراه بود که حاکی از پویایی منعطف ولی متغیر خزانه رفتاری است.
آزمونهای رفتاری اختصاصی نشان داد تحرک کلی موشهای آپالیال و زنومغزی تفاوت معناداری با کنترل ندارد. با این حال، در دستگاه گیت CatWalk، موشهای آپالیال مدت نوسان گام کوتاهتری داشتند که در موشهای زنومغزی تعدیل شده بود. همچنین هماهنگی گامهای مورب که در موشهای کنترل دیده میشد، در گروههای آپالیال و XCX دستخوش تغییرات مرتبه بالاتر شده بود.
در آزمون حافظه کاری ماز Y، موشهای کنترل و زنومغزی عملکردی بالاتر از سطح شانس نشان دادند، در حالی که موشهای آپالیال دچار نقص بودند. در شرطیسازی ترس پاولفی، هر دو گروه آپالیال و XCX کاهش در پاسخ انجمادی را بروز دادند که نشانگر وابستگی این رفتار به کورتکس سینگولیت پیشین و هیپوکامپ است. در آزمونهای ارزیابی حساسیت حسی و دمایی و تمایل به تعاملات اجتماعی، تفاوت چشمگیری میان گروهها مشاهده نشد.
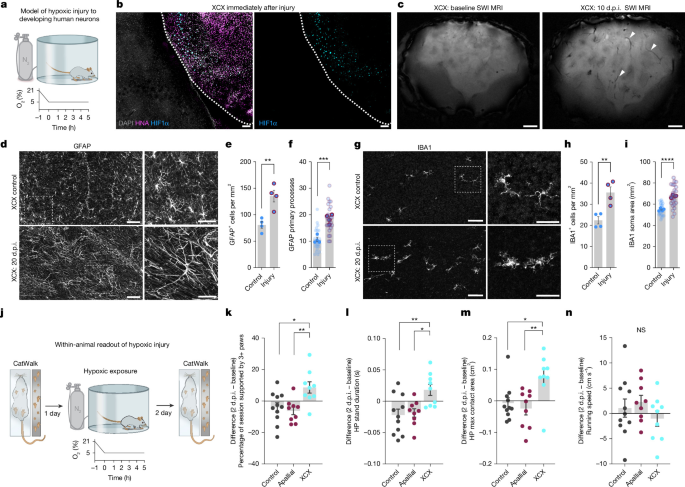
در گام بعدی، کاربرد موشهای زنومغزی در مدلسازی بیماریها از طریق قرار دادن آنها در معرض هیپوکسی حاد (اکسیژن ۵ درصد به مدت ۵ ساعت) بررسی شد. بافت پیوندی انسان پاسخ شدیدی با افزایش بیان فاکتور القاشونده با هیپوکسی (HIF1a) نشان داد، در حالی که بافت مجاور موش چنین پاسخی نداشت. تصویربرداری با وزن پذیرفتاری مغناطیسی (SWI) و بررسیهای بافتی نیز واکنشی بودن میکروگلیاها، آستروسیتها و رسوب فراوردههای خونی را منحصراً در بافت پیوندی انسانی تأیید کرد.
سنجشهای رفتاری پس از آسیب هیپوکسی نشان داد که موشهای زنومغزی برای حفظ تعادل، وضعیت اتکای ۳ یا ۴ پنجه را جایگزین اتکای ۲ پنجه کرده و سطح تماس پنجهها با زمین افزایش یافت. این تغییرات رفتاری اختصاصی بدون افت سرعت عمومی حرکت رخ داد که نشاندهنده قابلیت بالای این پلتفرم در ارائه سنجههای رفتاری دقیق پس از آسیبهای وارده به سلولهای انسانی است.
بحث و نتیجهگیری
پیوند ارگانوئیدهای مغز انسان به موشهای بدون کورتکس، ابزاری منحصربهفرد برای غلبه بر محدودیتهای فضایی و رقابتی بافت میزبان فراهم میآورد. این بستر نه تنها تولید سلولهای ویژه و نادری چون نورونهای مشابه فون اکونومو (VENs) را میسر میسازد، بلکه پایشهای الکتروفیزیولوژیک در سطح کل شبکه و ارزیابی خروجیهای رفتاری ناشی از سلولهای انسانی را امکانپذیر میسازد؛ دستاوردی که در بررسی فلج مغزی و ناهنجاریهای تکوینی بسیار نویدبخش است.
بقای موشهای آپالیال با وجود از دست دادن نیمی از حجم مغز، امکان پیگیریهای رفتاری را با کمترین تداخل حرکتی فراهم میسازد. راهبرد تخریب ژنتیکی از طریق حذف Esco2 کارآمدی بالاتری در تخلیه قشر مغز نسبت به مدلهای پیشین نشان داد و بستری پایدار برای پذیرش و توسعه بافت پیوندی انسانی مهیا ساخت.
مزایای برجسته این روش عبارتند از: کاهش رقابت با مدارهای میزبان، تولید ردههای سلولی تکاملیافته لایه ۵، پایش پاسخهای دارویی در حجم بزرگ بافتی و امکان انجام مطالعات پیشبالینی جهت سلولدرمانی در ناهنجاریهایی همچون میکروسفالی یا آسیبهای ایسکمیک دوران نوزادی.
با وجود دستاوردهای حاضر، عدم لایهبندی کامل قشر، بازنمایی ناکامل نورونهای بینابینی گابائرژیک و عدم تطابق سرعت تکوین سلولهای انسان و جونده از جمله محدودیتهایی است که نیازمند بهینهسازیهای آینده و انجام دستکاریهای اختصاصی مداری خواهد بود.
تکامل این فناوریها و شبیهسازی ساختارهای پیشرفتهتر مغز انسان درون مدلهای جانوری، مستلزم چارچوبهای اخلاقی مدون، همکاری نزدیک میان پژوهشگران، متخصصان اخلاق زیستی و مراجع نظارتی است تا توسعه این ابزارهای کارآمد در مسیری مسئولانه و اثربخش هدایت شود.
روشهای پژوهش
موشهای تراریخته Emx1-cre، Esco2fl/fl و C57BL SCID برای ایجاد آمیزش ژنتیکی مورد استفاده قرار گرفتند. برای افزایش نرخ بقای نوزادان، از رژیمهای غذایی پرکالری و مادران رضاعی نژاد سوئیس وبستر استفاده شد.
ارگانوئیدهای قشر مغز (hCOs) از سلولهای hiPS تولید و با استفاده از لنتیویروسهای حاوی پروموتر hSYN1 (حامل GCaMP8s، oScarlet یا eYFP) یا ردیابهای ویروس هاری نشاندار شدند.
پیوند چهار ارگانوئید به موشهای آپالیال در روزهای P5 تا P17 پس از تولد انجام شد. تصویربرداریهای MRI و DWI در اسکنر ۷ تسلا برای پایش رشد بافت صورت گرفت و فعالیت الکتریکی با تصویربرداری کلسیمی OEG و پروبهای ۳۲ کاناله سیلیکونی LFP در موشهای بیدار ثبت گردید.
آزمونهای رفتاری شامل تحلیل حرکتی MoSeq، میدان باز، دستگاه گیت CatWalk XT، ماز Y، شرطیسازی ترس و آزمونهای حسی بود. القای هیپوکسی نیز با قرارگیری در معرض اکسیژن ۵ درصد به مدت ۵ ساعت انجام شد.
کلیه مراحل آزمایشگاهی مطابق با دستورالعملهای انجمن بینالمللی تحقیقات سلولهای بنیادی (ISSCR) و با تأیید کمیتههای اخلاق زیستی دانشگاه استنفورد (SCRO و IACUC) انجام شده است.